Architecture de la chromatine
L'organisation tridimensionnelle de l'ADN, des histones et des complexes réglementaires qui aide à contrôler l'activité du génome à l'intérieur du noyau.
- Revision
- 1
- Created by
- SCIENDIA Knowledge Desk
- Updated by
- SCIENDIA Knowledge Desk
- Last updated
- 19.08.2026 09:05
Built by the community
Members can improve this article. Every saved change remains visible in the revision ledger.
Aperçu général
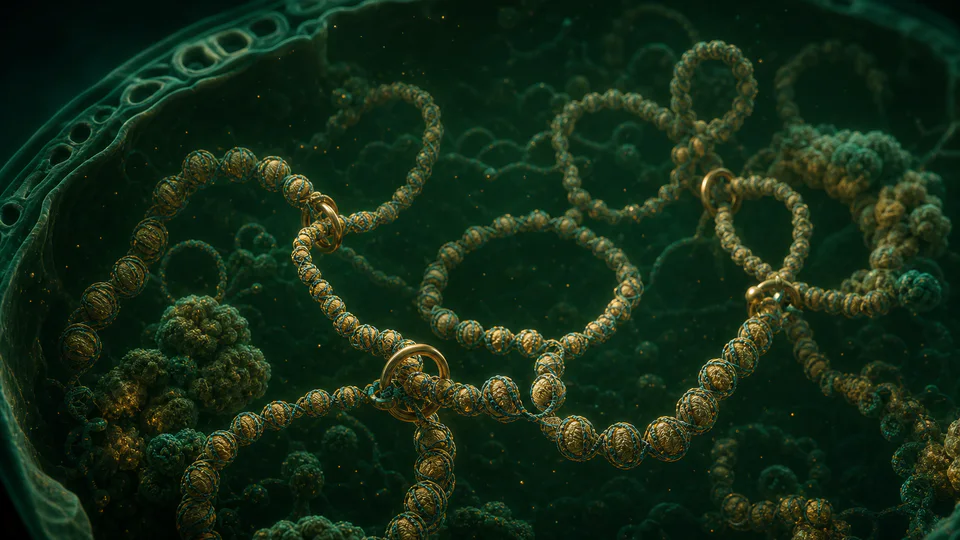
L'architecture de la chromatine décrit la durée de la pliage des molécules d'ADN des nucléosomes en boucles, domaines, compartiments et territoires chromosomiques. Cette organisation est dynamique plutôt qu'un échafaudage fixe. Elle influence les promoteurs de contact, la manière dont se déroule la réplication, les dommages causés par l'ADN et les régions génomiques qui restent actives ou réprimées dans un état cellulaire particulier.
Fondations techniques
La chromatine est un polymère dont les monomères sont des nucléosomes, mais son pliage est limité par des protéines spécifiques à la séquence, l'activité transcriptionnelle et l'environnement nucléaire. Les modèles d'extrusion de boucles traitent la cohésin comme un complexe de type moteur qui élargit une boucle de chromatine jusqu'à la libération ou à une limite convergente du FCTC. À plus grande échelle, les interactions préférentielles entre régions actives ou inactives produisent des compartiments A et B. Les ensembles de polymères concilient les contacts locaux fréquents avec une variabilité cellulaire importante. Le stress topologique, le condensat et l'attache à la lamina ou au nucléole créent des couches organisationnelles supplémentaires.
Comment ça marche
Les complexes de cohesin peuvent extruder des boucles jusqu'à ce qu'ils rencontrent des protéines limitrophes orientées comme la FCTC, aidant à former des domaines de contact. La chromatine active et inactive se sépare dans de larges compartiments par des interactions de polymères et des protéines associées. La transcription, le superplafond, l'attachement à la lame nucléaire et les condensations séparées par phase façonnent davantage les contacts locaux. Pendant la mitose, l'organisation interphase est remplacée par des chromosomes compacts, puis reconstruite après division.
Méthodes de mesure et de recherche
Les méthodes de conformation-chormosome ligèrent des segments d'ADN qui étaient reliés les uns aux autres, produisant des matrices de contact après séquençage et correction de biais. Les méthodes d'imagerie telles que l'hybridation in situ à fluorescence multiplexée tracent des locus directement dans des cellules individuelles, tandis que le marquage à cellules vivantes mesure le mouvement. Les analyses protéiques permettent de cartographier la cohésine, le CTCF, les marques d'histones et les facteurs de transcription. Les perturbations utilisent des dégrilles, la suppression des frontières ou le recrutement ciblé, suivies de mesures de transcription et de contact. La résolution, le nombre de cellules, la distance génomique et les effets par lots doivent être signalés parce qu'ils influencent fortement les domaines et les boucles apparents.
Principales idées
- Une carte des fréquences de contact indique les probabilités de population, et non une structure littérale partagée par chaque cellule.
- La proximité accrue peut soutenir la réglementation sans prouver qu'un contact détecté est causal.
- La séquence génomique, l'état épigénétique, la transcription et la mécanique nucléaire déterminent conjointement le repliement.
Frontière actuelle de la recherche
La recherche actuelle intègre des données de conformation, d'imagerie, d'accessibilité, de transcription et de lignage à une seule cellule pour relier le pliage au devenir cellulaire. Les études mécanistes demandent quand un contact conduit à la régulation des gènes et quand les deux proviennent d'un troisième processus. Les travaux sur la maladie portent sur le détournement d'un hausseur, la répétition de l'expansion et la compartimentalisation altérée. Les systèmes de boucles synthétiques peuvent tester des règles causales ou contrôler des gènes thérapeutiques. Les problèmes restants comprennent la reconstruction de trajectoires dynamiques en quatre dimensions à partir de clichés clairs et l'explication de l'échelle des événements moléculaires locaux en territoires chromosomiques reproductibles sans supposer une structure consensuelle.
Pourquoi ça compte
L'analyse génomique tridimensionnelle explique comment les variantes règlementaires lointaines peuvent affecter les gènes et pourquoi les réarrangements structurels activent parfois les oncogènes. Il informe la biologie du développement, le diagnostic de maladies rares, la recherche sur le cancer et les stratégies pour l'ingénierie de la régulation génique sans changer la séquence de codage des protéines.
Limites et questions ouvertes
Les structures de la chromatine varient selon les cellules et le temps, tandis que la plupart des essais permettent de mesurer des millions de conformations ou de couvrir les échanges pour la résolution d'une cellule. La recoupement et la reconstruction peuvent introduire des biais. Perturber une protéine architecturale change souvent la transcription et la physiologie cellulaire simultanément, ce qui rend difficile de séparer les mécanismes de repli direct des effets secondaires.
Explore through connected concepts
This article is indexed with 20 technical tags. Select a tag to explore the Wiki by concept.
You may also explore
Recommended from the technical tags shared with this article.
Régulation épigénétique
Contrôle héritable ou persistant de l'activité génique médiée par l'état de la chromatine sans changement de séquence d'ADN.
Read article →